1. Embryonalwoche (Blastozyste): Phasen und Dynamik, Klassifikation
Leitfaden zur ersten Embryonalwoche: Von der Befruchtung bis zur Einnistung. Klassifikationen der menschlichen Blastozysten, Beurteilungskriterien und Teilungsstadien.


Anästhesiologie
Schmerztherapie und Sedierungstechniken

Angiologie
Arterielle und venöse Erkrankungen

Dermatologie
Erkrankungen der Haut und des Unterhautzellgewebes

Embryologie
Stadien der Embryogenese und angeborene Anomalien

Endokrinologie
Störungen der Drüsen und hormonelles Ungleichgewicht

Gastroenterologie
Magen-, Darm- und Verdauungskrankheiten

Geburtshilfe
Schwangerschaftskomplikationen und abnormale Lage des Fötus

Gynäkologie
Erkrankungen der weiblichen Geschlechtsorgane

Hals-Nasen-Ohren-Heilkunde
Ohren-, Nasen- und Halserkrankungen

Hämatologie
Hämatopoese und Blutkrankheiten

Hepatologie
Erkrankungen der Leber, der Gallenblase und der Gallenwege

Histologie
Mikroskopische Gewebe- und Zellstrukturen

Infektionskrankheiten
Bakterielle, virale und parasitäre Infektionen

Kardiologie
Erworbene und angeborene Herzerkrankungen

Neurologie
Erkrankungen des Gehirns, des Rückenmarks und der peripheren Nerven

Onkologie
Krebsarten, gutartige und bösartige Tumoren

Ophthalmologie
Zustände/Erkrankungen, die Augen und Sehvermögen betreffen

Orthopädie
Erkrankungen der Knochen, Gelenke und Weichteile

Pädiatrie
Gesundheit, Entwicklung und klinische Zustände von Kindern

Physiologie
Biologische Prozesse in Organen und Systemen

Pneumologie
Lungen- und Atemwegserkrankungen

Traumatologie
Akute Verletzungen und Traumata des Bewegungsapparats

Urologie
Erkrankungen der Harnwege und der männlichen Fortpflanzungsorgane

Zahnmedizin
Erkrankungen der Zähne, des Zahnfleisches und der Mundhöhle
Anästhesiologie
Schmerztherapie und Sedierungstechniken
Angiologie
Arterielle und venöse Erkrankungen
Dermatologie
Erkrankungen der Haut und des Unterhautzellgewebes
Embryologie
Stadien der Embryogenese und angeborene Anomalien
Endokrinologie
Störungen der Drüsen und hormonelles Ungleichgewicht
Gastroenterologie
Magen-, Darm- und Verdauungskrankheiten
Geburtshilfe
Schwangerschaftskomplikationen und abnormale Lage des Fötus
Gynäkologie
Erkrankungen der weiblichen Geschlechtsorgane
Hals-Nasen-Ohren-Heilkunde
Ohren-, Nasen- und Halserkrankungen
Hämatologie
Hämatopoese und Blutkrankheiten
Hepatologie
Erkrankungen der Leber, der Gallenblase und der Gallenwege
Histologie
Mikroskopische Gewebe- und Zellstrukturen
Infektionskrankheiten
Bakterielle, virale und parasitäre Infektionen
Kardiologie
Erworbene und angeborene Herzerkrankungen
Neurologie
Erkrankungen des Gehirns, des Rückenmarks und der peripheren Nerven
Onkologie
Krebsarten, gutartige und bösartige Tumoren
Ophthalmologie
Zustände/Erkrankungen, die Augen und Sehvermögen betreffen
Orthopädie
Erkrankungen der Knochen, Gelenke und Weichteile
Pädiatrie
Gesundheit, Entwicklung und klinische Zustände von Kindern
Physiologie
Biologische Prozesse in Organen und Systemen
Pneumologie
Lungen- und Atemwegserkrankungen
Traumatologie
Akute Verletzungen und Traumata des Bewegungsapparats
Urologie
Erkrankungen der Harnwege und der männlichen Fortpflanzungsorgane
Zahnmedizin
Erkrankungen der Zähne, des Zahnfleisches und der Mundhöhle
Spezialitäten
AnästhesiologieAngiologieDermatologieEmbryologieEndokrinologieGastroenterologieGeburtshilfeGynäkologieHals-Nasen-Ohren-HeilkundeHämatologieHepatologieHistologieInfektionskrankheitenKardiologieNeurologieOnkologieOphthalmologieOrthopädiePädiatriePhysiologiePneumologieTraumatologieUrologieZahnmedizin
Dieser Artikel dient nur zu Informationszwecken
Der Inhalt dieser Website, einschließlich Texten, Grafiken und anderen Materialien, dient ausschließlich Informationszwecken. Sie sind nicht als Rat oder Anleitung gedacht. Bitte konsultieren Sie Ihren medizinischen Betreuer, wenn es um Ihren speziellen Gesundheitszustand oder Ihre Behandlung geht.
Der 14. Entwicklungstag nach der Befruchtung stellt eine der wichtigsten Phasen der frühen Embryogenese dar. In dieser Phase beginnt die Gastrulation, bei der sich die zweiblättrige Keimscheibe (Embryonalscheibe) in eine dreiblättrige Keimscheibe umwandelt und folgende Keimblätter enthält: Ektoderm, Mesoderm und Entoderm (Endoderm).
Dies ist die Übergangsphase zwischen der Implantation (Einnistung) und der aktiven Gastrulation. In dieser Phase beginnt die Wechselwirkung zwischen dem Embryo und dem mütterlichen Organismus über die Lakunen des Synzytiotrophoblasten.
Gleichzeitig entstehen die Hauptachsen des Körpers, wodurch der Grundstein für die zukünftige Körpergliederung gelegt wird:
Parallel zu diesen Prozessen schreitet die Bildung der extraembryonalen Strukturen voran, die für den normalen Austausch zwischen dem Embryo und dem mütterlichen Organismus notwendig sind.
Zu diesem Zeitpunkt beträgt die Größe der Keimscheibe etwa 1,5–2 mm. Trotz ihrer geringen Größe behält die Embryonalscheibe ihren zweiblättrigen Aufbau bei, befindet sich jedoch bereits aktiv in der Umwandlungsphase.
Die Oberschicht wird durch den Epiblasten gebildet, der aus zylindrischen, hochprismatischen Zellen mit ausgeprägter apikal-basaler Polarität und hoher mitotischer Aktivität besteht. Der Epiblast ist die Quelle aller embryonalen Gewebe und bildet gleichzeitig die Wand der Amnionhöhle.
Aufgrund der Expression von E-Cadherinen bilden seine Zellen feste interzelluläre Kontakte. Im Bereich des kaudalen Endes werden diese Verbindungen jedoch allmählich schwächer, was den Epiblasten auf die Migration vorbereitet.
Die untere Schicht der Embryonalscheibe wird durch den Hypoblasten gebildet, der aus flachen Zellen besteht, die eine dünne Platte formen. Die Hypoblastzellen sind nicht direkt an der Bildung des embryonalen Gewebes beteiligt, sorgen jedoch für die Entwicklung des extraembryonalen Entoderms und die Entstehung des Dottersacks.
Darüber hinaus sezernieren sie die Signalmoleküle: LEFTY1, Cer1 und DKK1, die die Expression von WNT und NODAL im kranialen Bereich hemmen, wodurch eine übermäßige Mesodermbildung verhindert und die korrekte Entwicklung der vorderen Strukturen gefördert wird.
Am kaudalen Ende der Keimscheibe bildet sich der Primitivstreifen, eine Zellverdichtung des Epiblasten, die das erste morphologische Anzeichen für den Beginn der Gastrulation darstellt und die kraniokaudale Achse des Embryos bestimmt.
Die Zellen des Streifens verlieren ihre apikal-basale Polarität, bauen unter Beteiligung von Rho-GTPasen ihr Zytoskelett um und erwerben Migrationsfähigkeit.
Im kranialen Teil des Streifens bildet sich der Primitivknoten (Hensen-Knoten), der als Organisationszentrum dient. Seine Zellen sezernieren NODAL, FGF8 und WNT3A, die die Prozesse der epithel-mesenchymalen Transition aktivieren, wodurch die Epiblastzellen beginnen, aktiv in das Innere der Keimscheibe einzuwandern.
Ab dem 14. Tag kommt es zu einer streng geordneten Wanderung der Epiblastzellen.
So findet genau in dieser Phase die endgültige Differenzierung der drei Keimblätter (Ektoderm, Mesoderm und Entoderm) statt, die als Grundlage für die weitere Organbildung dient.
Im kranialen Bereich der Embryonalscheibe entsteht die Prächordalplatte, eine lokale Verdichtung von Mesodermzellen, die als früher Marker der Rachenmembran (Buccopharyngealmembran) und als wichtiger Orientierungspunkt für das kraniale Ende des Embryos dient.
Parallel zu diesen morphogenetischen Prozessen entstehen die räumlichen Achsen des Embryos.
Nachstehend wird ein detaillierter Aufbauplan dargestellt:


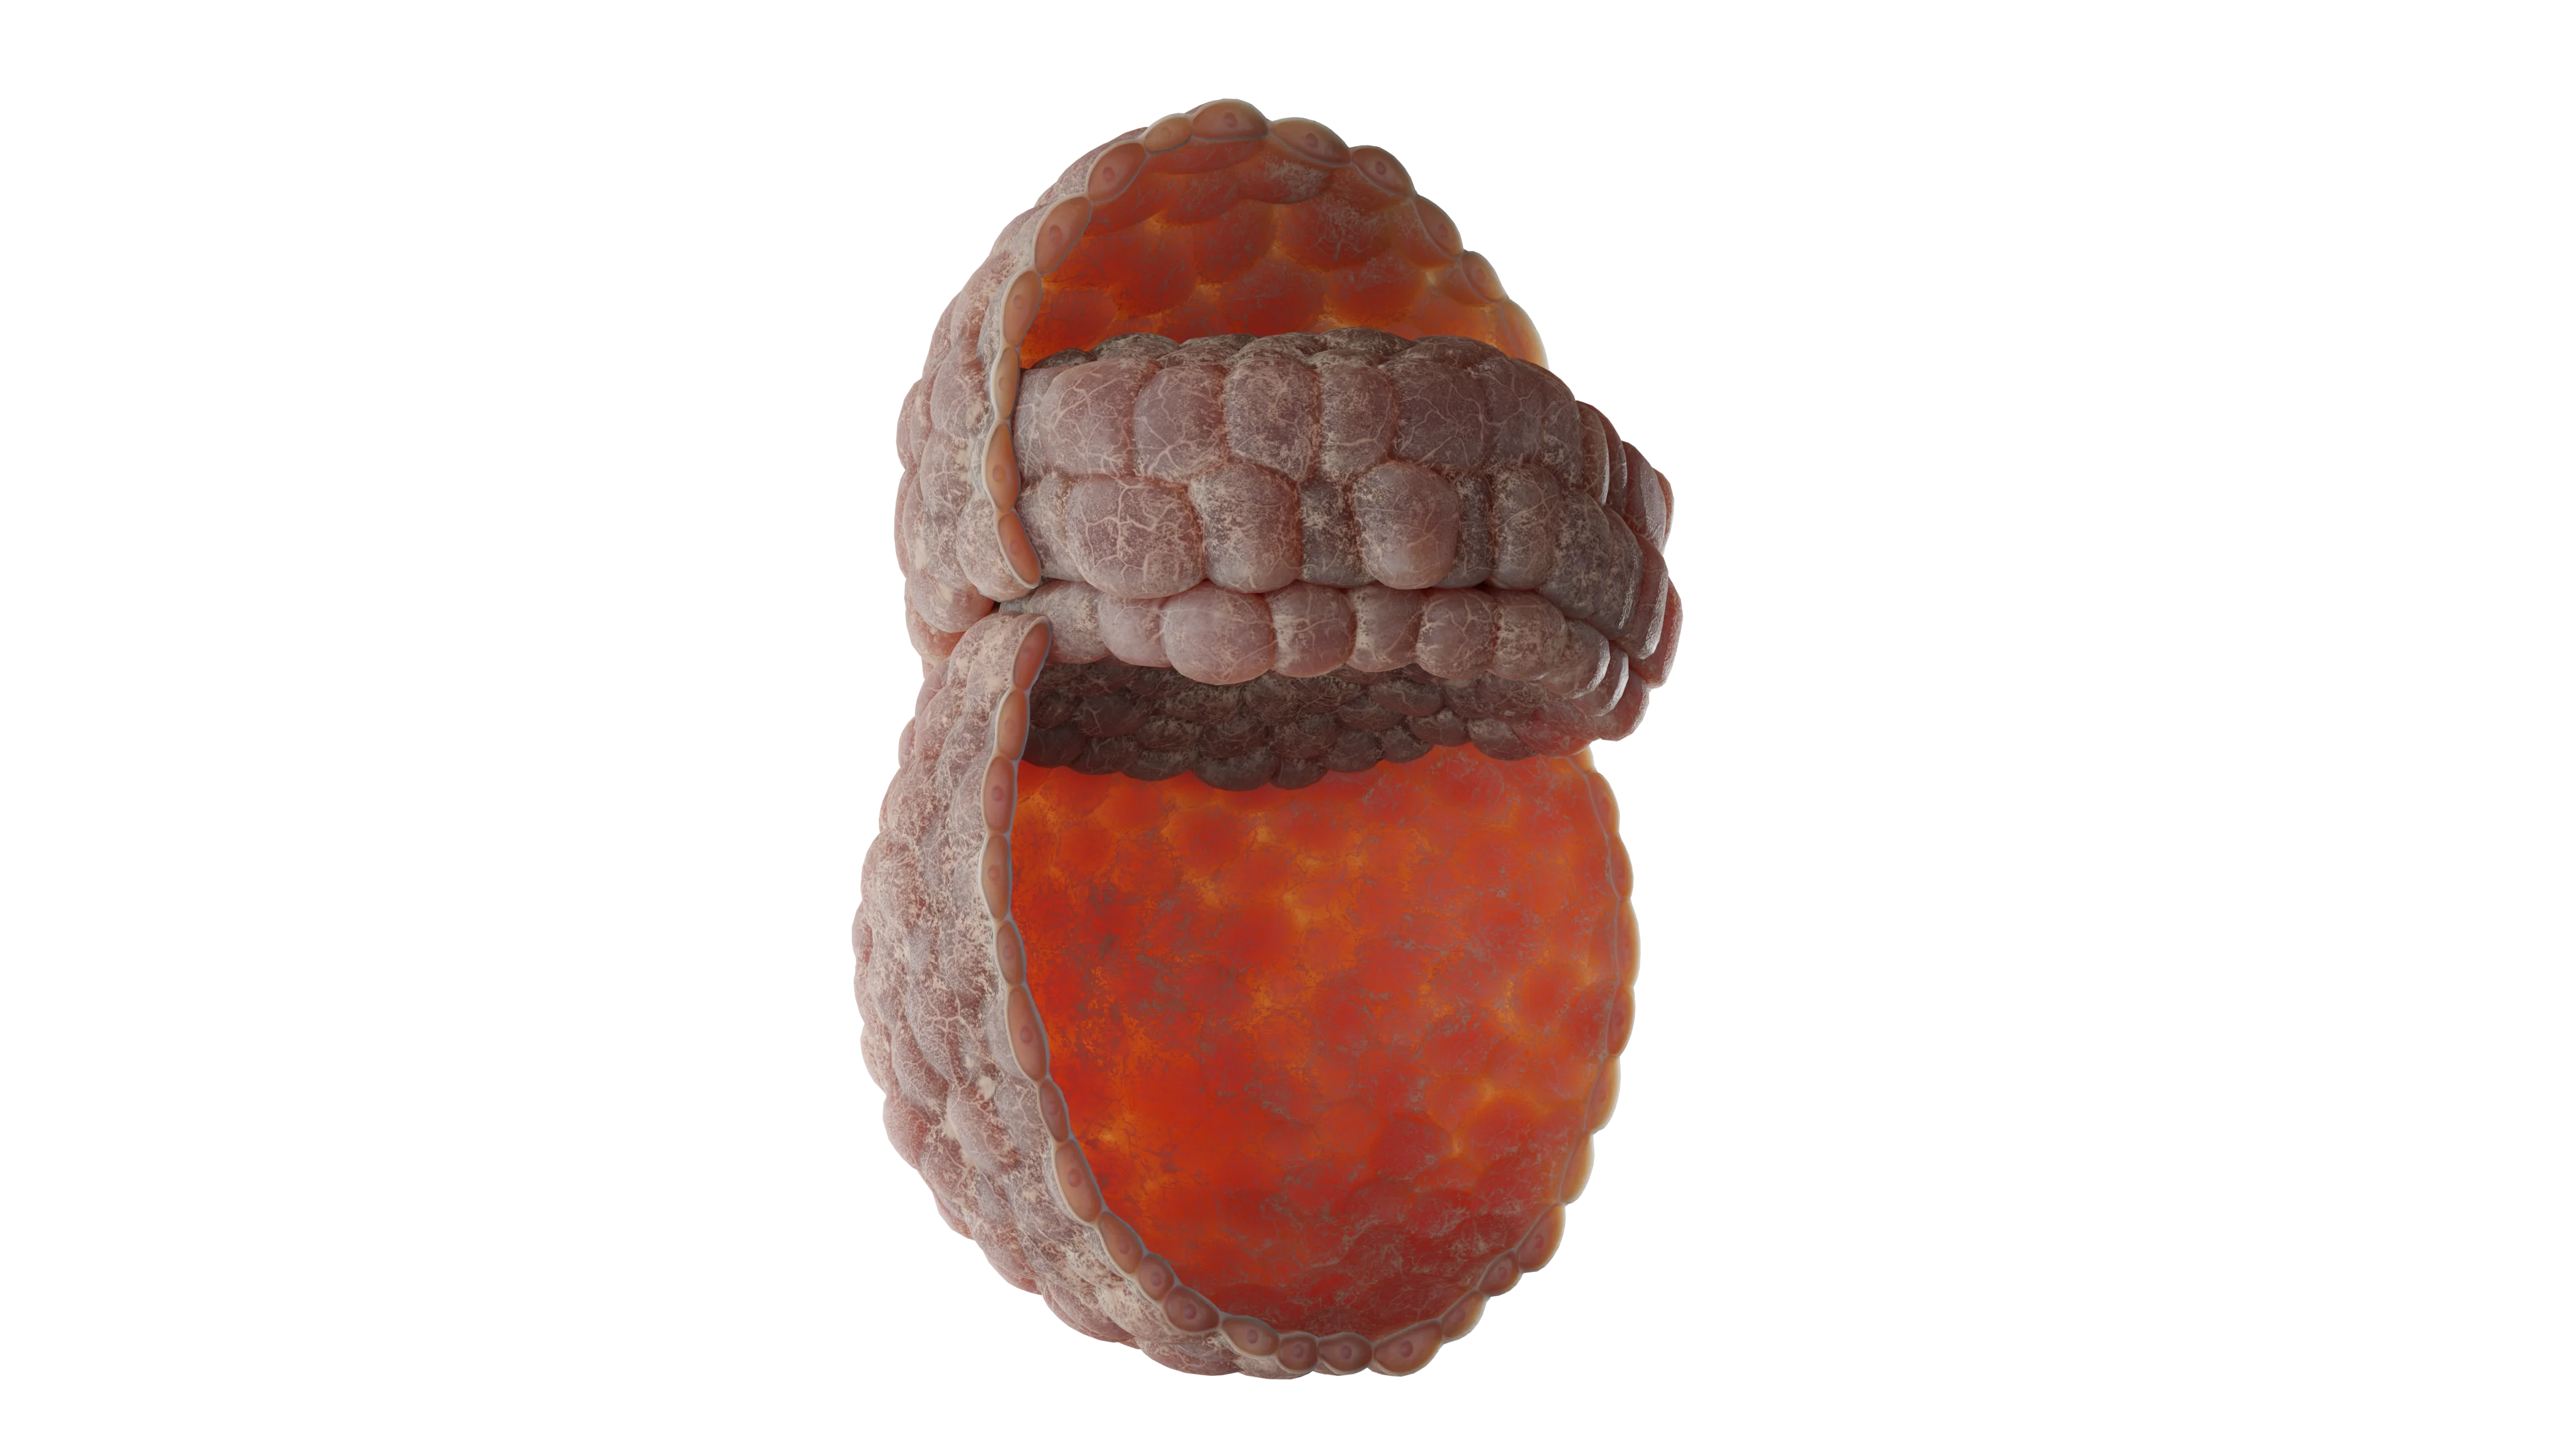


In dieser Phase ist die Entwicklung des Embryos eng mit der Bildung der extraembryonalen Strukturen verbunden, die für seine Nährstoffversorgung, seinen Schutz und die Anlage der zukünftigen Plazenta sorgen.
Das Amnion bildet sich aus Amnionblasten, die aus dem Epiblasten stammen. Diese Zellen bilden eine dünne Membran, die die Amnionhöhle auskleidet, die sich über dem Epiblasten befindet. Die Amnionhöhle vergrößert sich allmählich und füllt sich mit Fruchtwasser. Bereits in dieser Phase beginnt das Amnion, eine Schutzfunktion zu erfüllen, indem es ein optimales Milieu für die Entwicklung des Embryos schafft.
Am 14. Tag nimmt der Dottersack die Form des sekundären (definitiven) Dottersacks an. Seine Wand ist mit Zellen des Hypoblasten und des extraembryonalen Entoderms ausgekleidet. Später bilden sich gerade im Dottersack die Zentren der ersten Blutbildung und die Vorläufer der Geschlechtszellen.
Obwohl der Dottersack beim Menschen nicht an der Nährstoffversorgung des Embryos beteiligt ist, hat er eine wichtige Bedeutung als Quelle für Zellreihen und als vorübergehendes blutbildendes Organ.
Das Chorion bildet sich aus Zellen des Trophoblasten und des angrenzenden extraembryonalen Mesoderms. In dieser Phase finden im Chorion entscheidende Veränderungen statt, die die spätere Bildung der Plazenta bestimmen. Das Eindringen des Trophoblasten in das Endometrium geht mit der Entwicklung des Zottenapparats einher: Es bilden sich Primärzotten, deren Kern aus Zytotrophoblastzellen besteht, während der Überzug aus dem Synzytiotrophoblasten gebildet wird.
Tiefliegend im Synzytiotrophoblasten bilden sich Lakunen, die sich allmählich mit mütterlichem Blut füllen. Dieser Prozess markiert den Beginn der Entstehung des primitiven Stoffwechsels zwischen Mutter und Embryo, der ersten Form des plazentaren Kreislaufes.
Obwohl sich die Allantois erst etwas später (etwa am 16. Tag) zu bilden beginnt, wird bereits in dieser Phase im kaudalen Teil der Embryonalscheibe ein Bereich angelegt, aus dem sie später hervorgehen wird. Die Allantois spielt eine wichtige Rolle bei der Bildung der Blutgefäße der Plazenta und der Anlage der Harnblase.
In der Embryologie wird die Entwicklung des Menschen üblicherweise anhand der Carnegie-Stadien (Carnegie stages) beschrieben. Dabei handelt es sich um ein universelles Klassifikationssystem, das nicht auf dem Alter des Embryos in Tagen, sondern auf seinen morphologischen Merkmalen basiert. Insgesamt werden 23 Stadien unterschieden, die den Zeitraum von der Befruchtung bis zum Ende der 8. Woche (56. Tag) umfassen.
In dieser Phase befindet sich der Embryo im Carnegie-Stadium 6. Im klinischen Sinne ist dies der Zeitpunkt, an dem der Embryo noch keine klaren Körperachsen (Kopf–Schwanz, Rücken–Bauch) aufweist, sich jedoch bereits die wichtigsten extraembryonalen Strukturen bilden, die für sein weiteres Wachstum und die Einnistung sorgen.
Das zentrale Ereignis dieses Stadiums ist das Entstehen der Voraussetzungen für die Gastrulation, die im nächsten Stadium beginnt. Das Carnegie-Stadium 6 ist durch folgende Merkmale gekennzeichnet:
Hauptprozesse dieser Zeit:

Progression der Embryogenese nach Carnegie (Stadien 5–7)
| Stadium 5 (11.–13. Tag) | Stadium 6 (13.–15. Tag) | Stadium 7 (16.–19. Tag) |
|---|---|---|
| Abschluss der Implantation | Sekundärer Dottersack | Primitivstreifen und Hensen-Knoten |
| Zweiblättrige Keimscheibe | Amnion | Beginn der Gastrulation |
| Amnionhöhle | Chorion mit Primärzotten | Chordafortsatz |
| Primärer Dottersack | Extraembryonales Zölom | Bildung von 3 Keimblättern |
| Lakunen im Synzytiotrophoblasten | Vorbereitung auf die Gastrulation | Festlegung der Körperachsen |
Weitere wissenschaftlich korrekte Inhalte finden Sie in unseren sozialen Medien


Die Bildung des Primitivstreifens und die Aufteilung des Embryos in drei Keimblätter erfolgt unter der Kontrolle komplexer Signalkaskaden.
Als Schlüsselregulator dient das NODAL-System, das für Folgendes notwendig ist:
Der Effekt hängt vom Expressionsniveau ab:
Die räumliche Aktivität von NODAL wird durch seine Antagonisten LEFTY1, LEFTY2 und CER1, streng reguliert, wodurch eine übermäßige Mesodermbildung.
Proteine WNT3 und WNT3A:
Wechselwirkung von WNT mit BMP4:
Dabei ist ein striktes Gleichgewicht erforderlich:
Funktionen des von den Zellen des Primitivstreifens sekretierten Proteins FGF8:
Als Folge erlangen die Epiblastzellen die Fähigkeit, in das Innere des Embryos zu wandern.
Parallel dazu werden die Achsen des Embryos gebildet.
An diesen Prozessen sind auch Transkriptionsfaktoren beteiligt.
Gleichzeitig schreitet die Entwicklung der extraembryonalen Strukturen fort. Der Synzytiotrophoblast sezerniert humanes Choriongonadotropin (hCG, kodiert durch Gene der CGB-Familie), das die Funktion des Gelbkörpers aufrechterhält und die Progesteronsekretion sicherstellt.
Für eine erfolgreiche Einnistung und Entwicklung der Plazenta sind Metalloproteinasen (MMP2 und MMP9) erforderlich, die die interzelluläre Matrix des Endometriums zerstören und die Invasion des Trophoblasten ermöglichen. Die Faktoren VEGF und PGF stimulieren das Wachstum des Gefäßnetzes des Chorions und schaffen so die Voraussetzungen für den Stoffwechsel zwischen Mutter und Embryo.
Schließlich sorgt die Expression von HLA-G für die immunologische Toleranz der Mutter, indem sie die Zerstörung des Trophoblasten durch NK-Zellen blockiert und einen Immunkonflikt verhindert.
Somit lässt sich die Entwicklung in diesem Stadium als Wechselwirkung zweier Systeme darstellen:
Extraembryonale Signale (CGB, MMP, VEGF, HLA-G) sorgen für die Ernährung, Invasion und den Immunschutz des Embryos.
1. Kann man den Embryo in der 2. Woche im Ultraschall sehen?
2. Wo befindet sich der Embryo in der 2. Entwicklungswoche?
3. Wie groß ist der Embryo am 14. Tag genau?
4. Welche Symptome verspürt eine Frau in der 2. Woche der Embryogenese?
Quellenverweise
1.
VOKA 3D Anatomie und Pathologie – Vollständiger 3D-Atlas der normalen und pathologischen Anatomie) [Internet]. VOKA 3D Anatomie und Pathologie.
Verfügbar unter: https://catalog.voka.io/
2.
Sadler TW. Langman’s Medical Embryology. 14th ed. Philadelphia: Wolters Kluwer; 2019.
3.
Moore KL, Persaud TVN, Torchia MG. The Developing Human: Clinically Oriented Embryology. 11th ed. Philadelphia: Elsevier; 2020.
4.
Schoenwolf GC, Bleyl SB, Brauer PR, Francis-West PH. Larsen’s Human Embryology. 6th ed. Philadelphia: Elsevier; 2021.
5.
Deglincerti A, Croft GF, Pietila LN, et al. Self-organization of the in vitro attached human embryo. Nature. 2016;533(7602):251-254.
6.
Shahbazi MN, Jedrusik A, Vuoristo S, et al. Self-organization of the human embryo in the absence of maternal tissues. Nat Cell Biol. 2016;18(6):700-708.
7.
Xiang L, Yin Y, Zheng Y, et al. A developmental landscape of 3D-cultured human pre-gastrulation embryos. Nature. 2020;577(7791):537-542.
8.
Tyser RCV, Mahammadov E, Nakanoh S, et al. Single-cell transcriptomic characterization of a gastrulating human embryo. Nature. 2021;600(7888):285-289.
9.
Petropoulos S, Edsgärd D, Reinius B, et al. Single-cell RNA-seq reveals lineage and X chromosome dynamics in human preimplantation embryos. Cell. 2016;165(4):1012-1026.
10.
Blakeley P, Fogarty NM, del Valle I, et al. Defining the three cell lineages of the human blastocyst by single-cell RNA-seq. Development. 2015;142(18):3151-3165.
11.
Fogarty NME, McCarthy A, Snijders KE, et al. Genome editing reveals a role for OCT4 in human embryogenesis. Nature. 2017;550(7674):67-73.
12.
Rossant J. Genetic control of early cell lineages in the mammalian embryo. Annu Rev Genet. 2018;52:185-201.
13.
Arnold SJ, Robertson EJ. Making a commitment: cell lineage allocation and axis patterning in the early mouse embryo. Nat Rev Mol Cell Biol. 2009;10(2):91-103.
14.
Tam PPL, Behringer RR. Mouse gastrulation: the formation of a mammalian body plan. Mech Dev. 1997;68(1-2):3-25.
15.
Simunovic M, Brivanlou AH. Embryoids, organoids and gastruloids: new approaches to understanding embryogenesis. Development. 2017;144(6):976-985.
16.
Vento-Tormo R, Efremova M, Botting RA, et al. Single-cell reconstruction of the early maternal–fetal interface. Nature. 2018;563(7731):347-353.
17.
Turco MY, Moffett A. Development of the human placenta. Development. 2019;146(22):dev163428.
18.
Aplin JD, Ruane PT. Embryo–epithelium interactions during implantation. J Cell Sci. 2017;130(1):15-22.
19.
Norwitz ER, Schust DJ, Fisher SJ. Implantation and the survival of early pregnancy. N Engl J Med. 2001;345(19):1400-1408.
20.
Wang H, Dey SK. Roadmap to embryo implantation: clues from mouse models. Nat Rev Genet. 2006;7(3):185-199.
21.
Rossant J, Tam PPL. New insights into early human development: lessons from stem cell models. Nat Rev Genet. 2021;22(11):701-713.
Machen Sie VOKA zu Ihrer bevorzugten Informationsquelle
Weitere VOKA-Artikel in der Google-Suche anzeigen
Inhaltsübersicht




Artikel mit AI zusammenfassen
Wählen Sie Ihren bevorzugten KI-Assistenten:
Link erfolgreich in die Zwischenablage kopiert
Ich danke Ihnen!
Ihre Nachricht wird gesendet!
Unsere Experten werden sich in Kürze mit Ihnen in Verbindung setzen. Wenn Sie weitere Fragen haben, kontaktieren Sie uns bitte unter info@voka.io