Segunda semana del desarrollo embrionario: estructura, características morfogenéticas y significado clínico-anatómico
Golubova D.Ginecólogo, especialista en fertilidad, MD
20 min leer·febrero 26, 2026
Este artículo sólo tiene fines informativos
El contenido de este sitio web, incluidos textos, gráficos y otros materiales, se proporciona únicamente con fines informativos. No pretende ser un consejo u orientación. En relación con tu enfermedad o tratamiento específico, consulta a tu médico.
El día 14 del desarrollo humano posconcepcional constituye una de las etapas más importantes de la embriogénesis temprana. En este período se inicia la gastrulación, proceso mediante el cual, a partir del disco germinativo bilaminar, se forman las tres hojas germinativas: ectodermo, mesodermo y endodermo.
Es una etapa de transición entre la implantación y la gastrulación activa. En esta etapa empieza el intercambio entre el embrión y el organismo materno a través de las lagunas del sincitiotrofoblasto.
Simultáneamente, se establecen los principales ejes corporales, que determinan el plan de organización del futuro organismo:
craneocaudal;
dorsoventral;
izquierda-derecha.
Paralelamente a estos procesos, continúa la formación de las estructuras extraembrionarias, necesarias para el intercambio normal entre el embrión y el organismo materno.
Morfología del embrión en el día 14
En este momento, el tamaño del disco embrionario es de aproximadamente 1,5–2 mm. A pesar de su reducido tamaño, el disco mantiene una estructura bilaminar, pero ya está entrando activamente en la fase de reestructuración.
Epiblasto
La capa superior está constituida por el epiblasto, formado por células cilíndricas altas con marcada polaridad apicobasal y elevada actividad mitótica. El epiblasto da origen a todos los tejidos embrionarios y, al mismo tiempo, forma la pared de la cavidad amniótica.
Sus células mantienen uniones intercelulares adherentes mediadas por la expresión de E-cadherina; sin embargo, en la región caudal estas uniones se debilitan progresivamente, lo que prepara al epiblasto para la migración celular.
Hipoblasto
La capa inferior del disco embrionario es el hipoblasto, formado por células aplanadas que constituyen una lámina delgada. Las células del hipoblasto no participan directamente en la formación de los tejidos del embrión, pero aseguran el desarrollo del endodermo extraembrionario y la formación del saco vitelino.
Además, secretan moléculas señalizadoras, como LEFTY1, CER1 y DKK1, que inhiben la expresión de WNT y NODAL en la región craneal, evitando una mesodermización excesiva y favoreciendo el desarrollo adecuado de las estructuras anteriores.
Formación de la línea primitiva
En el extremo caudal del disco embrionario se forma la línea primitiva, un engrosamiento del epiblasto que constituye el primer signo morfológico del inicio de la gastrulación y establece el eje craneocaudal del embrión.
Las células de la línea primitiva pierden su polaridad apicobasal y reorganizan su citoesqueleto con la participación de las Rho-GTPasas, adquiriendo propiedades migratorias.
En la parte craneal de la línea primitiva se forma el nodo primitivo (nodo de Hensen), que actúa como centro organizador. Sus células secretan NODAL, FGF8 y WNT3A, que activan procesos de transición epitelio-mesenquimatosa, favoreciendo así la migración activa de las células del epiblasto hacia el interior del disco.
Formación de las hojas germinativas
A partir del día 14 se observa una migración de las células del epiblasto que sigue un patrón estrictamente ordenado.
La primera oleada de células desplaza al hipoblasto y forma el endodermo definitivo: la hoja germinativa que da origen al epitelio del tubo digestivo y del sistema respiratorio.
Las siguientes oleadas forman el mesodermo, que se sitúa entre el epiblasto y el endodermo y posteriormente dará lugar a los músculos, los vasos sanguíneos, los huesos, los riñones y el corazón.
Las células que permanecen en la superficie forman el ectodermo, del cual se desarrollarán el sistema nervioso, los órganos de los sentidos y la epidermis.
De este modo, es en esta etapa cuando se produce la diferenciación definitiva de las tres hojas germinativas —ectodermo, mesodermo y endodermo—, lo que constituye la base del posterior proceso de organogénesis.
Establecimiento de los ejes espaciales
En la región craneal del disco embrionario se forma la placa precordal, un engrosamiento localizado de las células del mesodermo que actúa como un marcador temprano de la membrana bucofaríngea y constituye una referencia anatómica importante del extremo craneal del embrión.
Paralelamente a estos procesos morfogenéticos, se establecen los ejes espaciales del embrión.
El eje craneocaudal se define por la formación de la línea primitiva y de la placa precordal;
El eje dorsoventral se relaciona con la disposición diferencial del epiblasto, situado dorsalmente, y el hipoblasto, situado ventralmente;
La asimetría izquierda-derecha se forma gracias a la actividad del nodo de Hensen: el movimiento de los cilios nodales genera un flujo de líquido dirigido, mientras que la expresión local de los genes NODAL y LEFTY2 activa el factor de transcripción PITX2 exclusivamente en el lado izquierdo, estableciendo así el programa de organogénesis del lado izquierdo.
A continuación se presenta un esquema detallado de la estructura:
Embrión en el día 14 de desarrollo (esquema 3D con numeración de estructuras)Embrión en el día 14 de desarrollo: modelo 3D
Amnios (esfera azul):
Deriva del epiblasto;
Forma la cavidad amniótica, llena de líquido amniótico;
Función: protección del embrión contra daños mecánicos y mantenimiento de un ambiente constante.
Se forma en el extremo caudal del disco embrionario;
Define el eje «cabeza-cola» (orientación craneocaudal);
Las células del epiblasto migran a través de ella, formando el mesodermo y el endodermo.
Nodo de Hensen (punto rojo oscuro en el extremo anterior de la línea):
Organizador del eje embrionario;
Regula el movimiento celular, la formación de la notocorda y la simetría corporal.
Migración celular (flechas):
Flechas verdes → Endodermo Las células reemplazan al hipoblasto y forman la capa interna, que da origen a los sistemas respiratorio y digestivo.
Flechas azules → Mesodermo Las células se sitúan entre el ectodermo y el endodermo, formando los músculos esqueléticos, los huesos, el tejido conjuntivo, los vasos sanguíneos y los riñones.
Flechas moradas → Ectodermo Las células que permanecen en el epiblasto forman la capa externa, de la cual se desarrollan la piel y el sistema nervioso.
Ejes (etiquetas alrededor del esquema):
Craneocaudal (cabeza ↔ cola);
Izquierda-derecha (futura simetría corporal);
Dorsoventral (espalda ↔ vientre).
Estructuras extraembrionarias
En esta etapa, el desarrollo del embrión está estrechamente relacionado con la formación de las estructuras extraembrionarias, que aseguran su nutrición, su protección y la formación de la futura placenta.
Amnios
El amnios se forma a partir de los amnioblastos, que se originan a partir del epiblasto. Estas células forman una membrana delgada que reviste la cavidad amniótica, situada por encima del epiblasto. La cavidad amniótica aumenta gradualmente de tamaño y se llena de líquido amniótico. Ya en esta etapa, el amnios comienza a desempeñar una función protectora, proporcionando un entorno adecuado para el desarrollo del embrión.
Saco vitelino
Hacia el día 14, el saco vitelino adquiere el aspecto de un saco secundario (definitivo). Su pared está revestida por células del hipoblasto y del endodermo extraembrionario. Posteriormente, es en el saco vitelino donde se establecen los focos de hematopoyesis primitiva y se forman las células germinales primordiales.
Aunque en el ser humano el saco vitelino no participa en la nutrición del embrión, desempeña un papel importante como fuente de diversos linajes celulares y como órgano hematopoyético temporal.
Corion
El corion se forma a partir del trofoblasto y del mesodermo extraembrionario adyacente. En esta etapa tienen lugar en el corion cambios clave que sientan las bases para la futura formación de la placenta. La invasión del trofoblasto en el endometrio se acompaña del desarrollo del aparato vellositario: se forman las vellosidades primarias, constituidas por una capa central de citotrofoblasto y una capa de sincitiotrofoblasto que la recubre.
En el sincitiotrofoblasto aparecen lagunas que gradualmente se llenan de sangre materna. Este proceso marca el inicio del intercambio uteroplacentario primitivo, la forma inicial de la circulación placentaria.
Alantoides (esbozo inicial)
Aunque el alantoides comienza a formarse un poco más tarde (aproximadamente a partir del día 16), en esta etapa ya se establece, en la región caudal del disco embrionario, el área a partir de la cual posteriormente se desarrollará. El alantoides desempeña un papel importante en el desarrollo de los vasos sanguíneos placentarios y en la formación inicial de la vejiga urinaria.
Estadios del desarrollo embrionario según Carnegie
En embriología, el desarrollo humano suele describirse según los estadios Carnegie (Carnegie stages), un sistema de clasificación universal basado no en la edad del embrión en días, sino en sus características morfológicas. En total se distinguen 23 estadios, que abarcan el período desde la fecundación hasta el final de la octava semana (día 56).
En esta fase, el embrión corresponde al estadio Carnegie 6. En términos clínicos, este es el momento en que el embrión aún no presenta ejes corporales definidos (cabeza-cola, espalda-vientre), pero ya se están formando las principales estructuras extraembrionarias que asegurarán su posterior crecimiento e implantación.
El acontecimiento clave de este estadio es la creación de las condiciones para la gastrulación, que comenzará en el siguiente estadio. El estadio Carnegie 6 se caracteriza por:
Edad del embrión: aproximadamente 13-15 días después de la fecundación;
Tamaño del embrión: aproximadamente 0,1-0,2 mm;
Característica: es el estadio del disco germinativo bilaminar (disco embrionario bilaminar).
Los principales procesos incluyen:
El embrión se presenta como un disco plano compuesto por epiblasto e hipoblasto;
Sobre el epiblasto se forma la cavidad amniótica, revestida por amnioblastos;
Debajo del hipoblasto se desarrolla el saco vitelino primario (y después secundario). Entre el citotrofoblasto y el exoceloma aparece el mesodermo extraembrionario, en cuyo interior se desarrolla progresivamente el espacio celómico extraembrionario;
Comienza la formación del corion y de las vellosidades coriónicas primarias (citotrofoblasto y sincitiotrofoblasto).
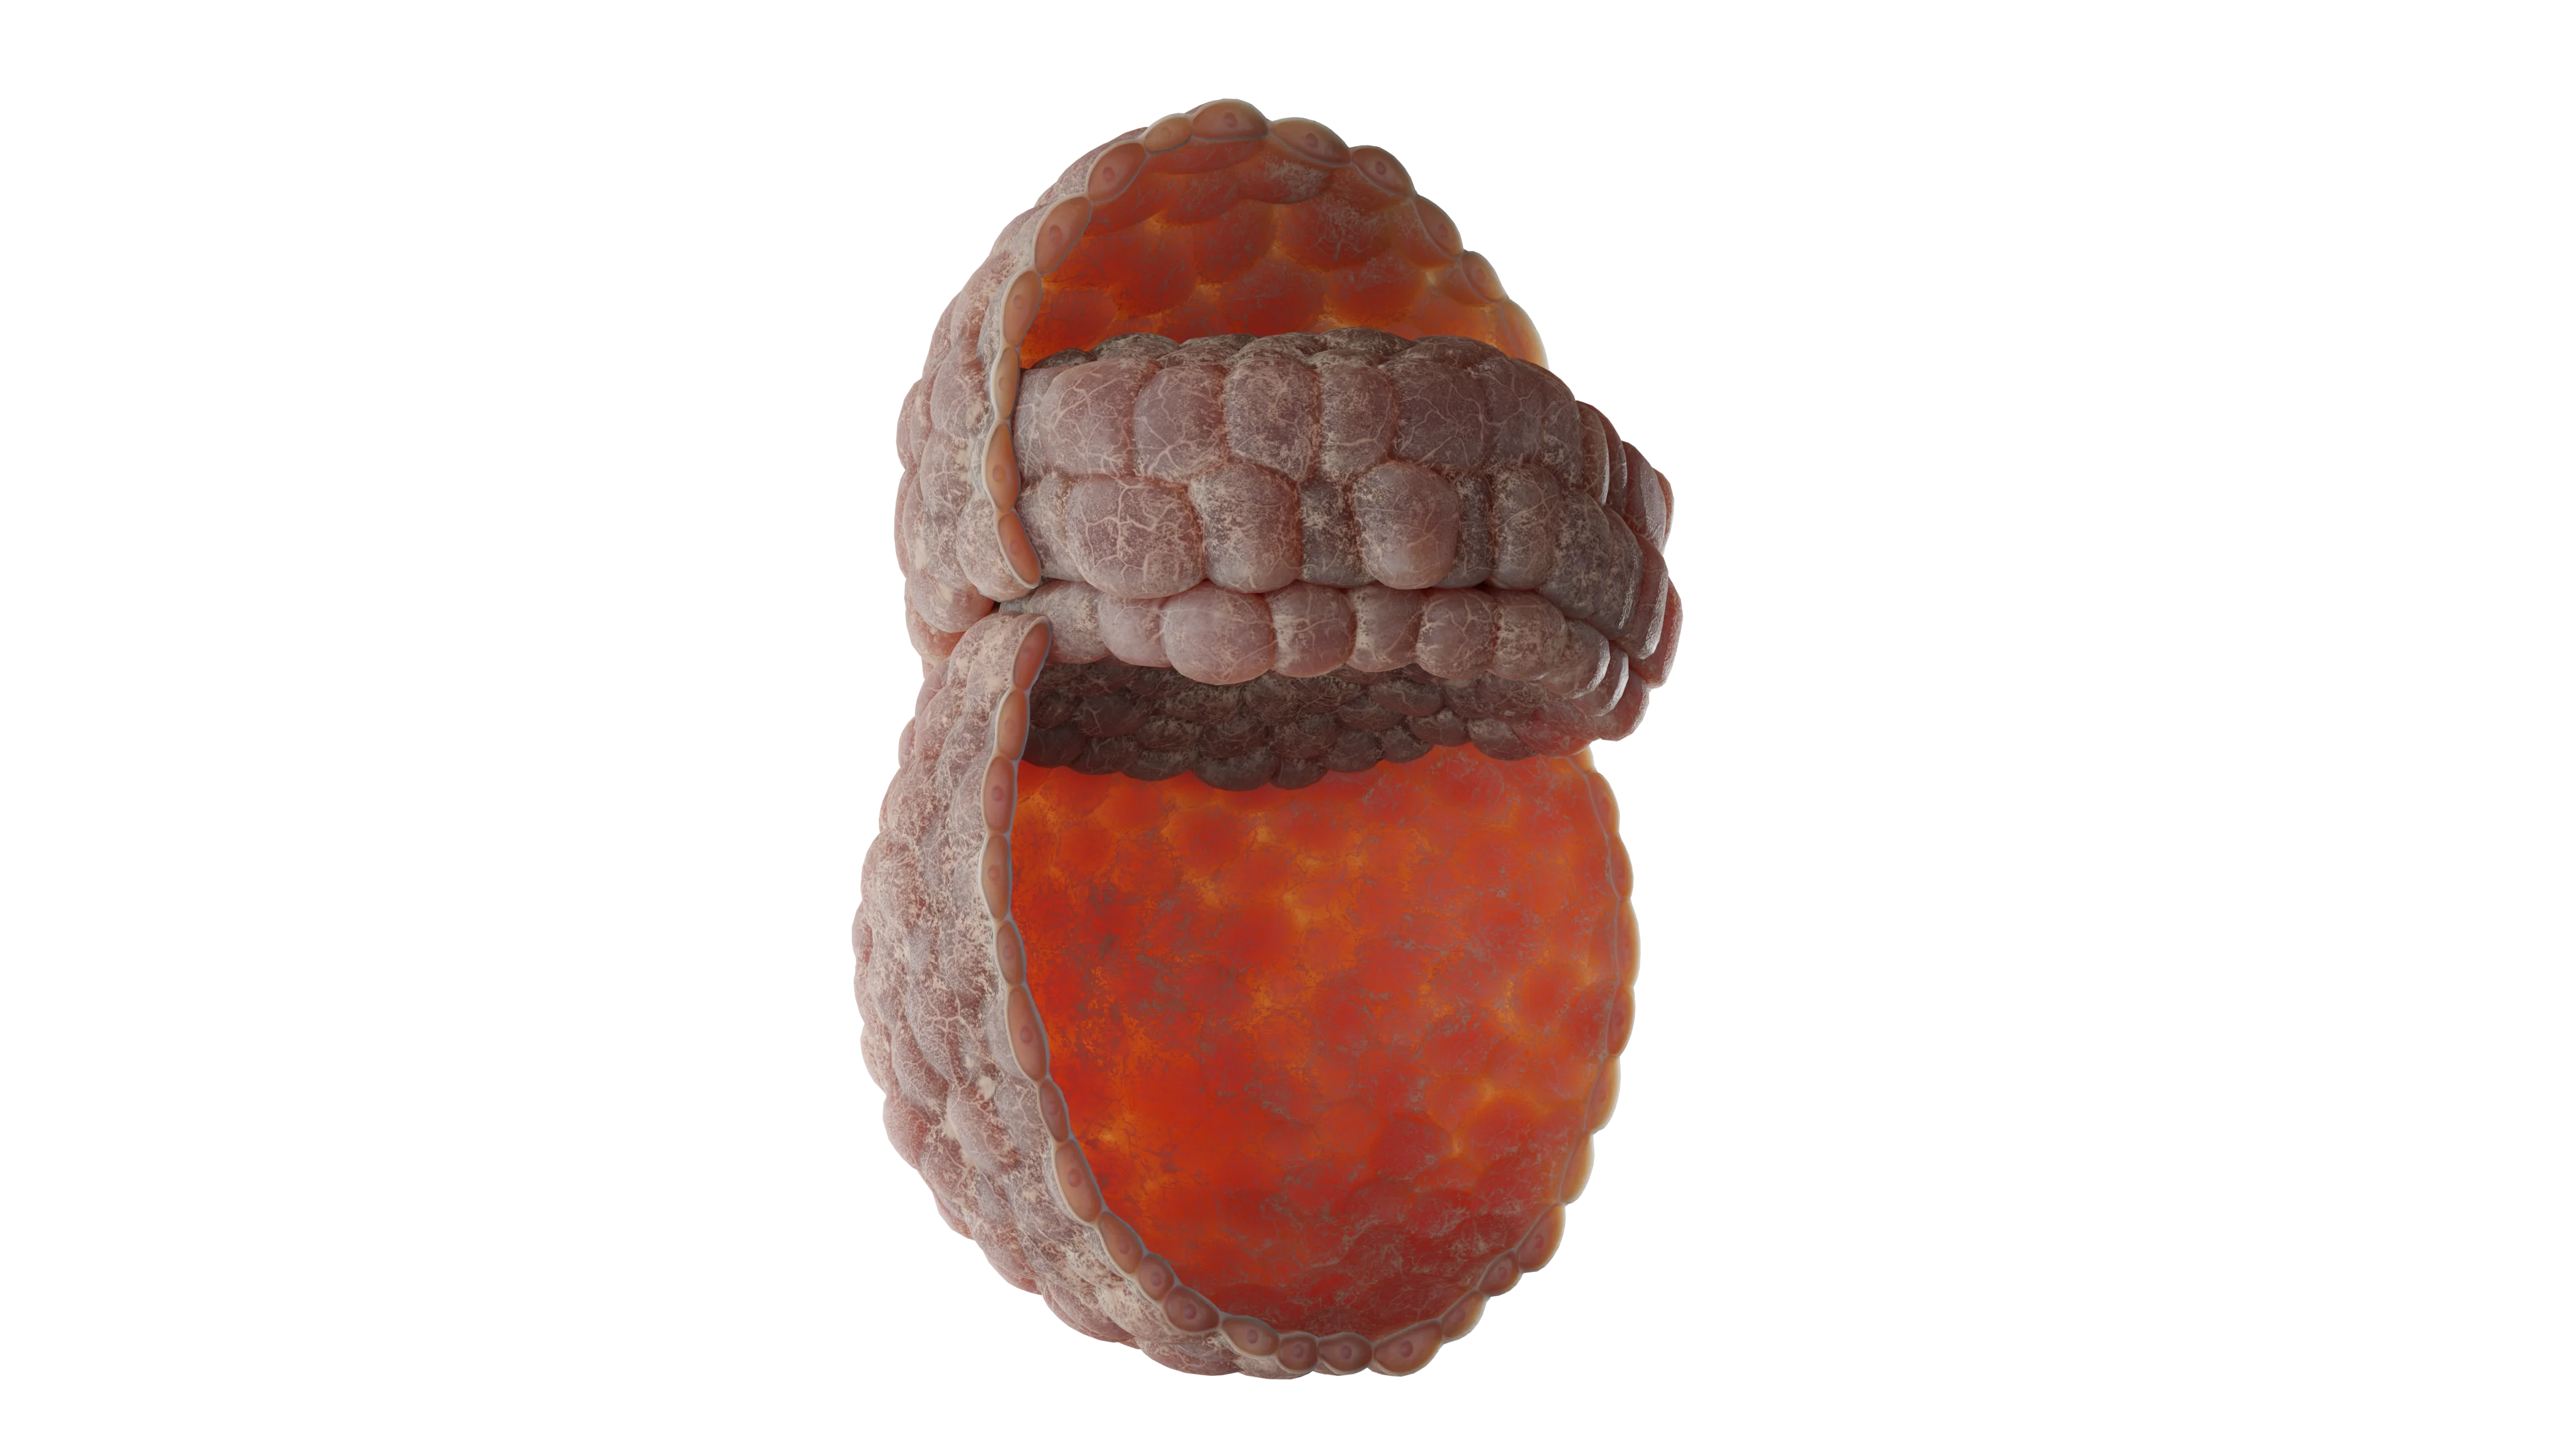
Disco embrionario con la cavidad amniótica y el saco vitelino: modelo 3D
Progresión del desarrollo embrionario según Carnegie (estadios 5-7)
Estadio 5 (11-13 días)
Estadio 6 (13-15 días)
Estadio 7 (16-19 días)
Finalización de la implantación
Saco vitelino secundario
Línea primitiva y nodo de Hensen
Disco bilaminar
Amnios
Inicio de la gastrulación
cavidad amniótica
Corion con vellosidades primarias
Proceso notocordal
Saco vitelino primario
Espacio celómico extraembrionario
Formación de las 3 hojas
Lagunas en el sincitiotrofoblasto
Preparación para la gastrulación
Establecimiento de los ejes corporales
Encuentra más contenido científicamente preciso en nuestras redes sociales
Suscríbete y no te pierdas los últimos recursos
Regulación molecular de la gastrulación y de los ejes
La formación de la línea primitiva y la diferenciación de las células del embrión en las tres hojas germinativas se llevan a cabo bajo el control de complejas cascadas de señalización.
Papel central de NODAL (familia TGF-β)
El regulador clave es el sistema NODAL, necesario para:
iniciar la migración de las células del epiblasto;
inducir el endodermo;
inducir el mesodermo.
El efecto depende del nivel de expresión:
alta expresión → formación de endodermo;
expresión más baja → formación de mesodermo.
La actividad espacial de NODAL está estrictamente controlada por sus antagonistas —LEFTY1, LEFTY2 y CER1—, lo que previene la formación excesiva de mesodermo.
Vía de señalización WNT e interacción con BMP4
Las proteínas WNT3 y WNT3A:
activan la expresión de NODAL;
potencian los procesos de mesodermogénesis.
La interacción entre WNT y BMP4:
potencia la formación de la línea primitiva;
favorece el desarrollo del mesodermo lateral.
Sin embargo, se requiere un estricto equilibrio:
BMP4 estimula el mesodermo;
sus inhibidores (CHORDIN, NOGGIN, FOLLISTATIN) limitan su actividad en la región dorsal;
esto asegura la formación del mesodermo axial y de la futura notocorda.
Regulación de la migración celular: papel de FGF8
La proteína FGF8, secretada por las células de la línea primitiva:
regula la migración de las células del epiblasto;
suprime la expresión de E-cadherina;
reduce la adhesión intercelular;
desencadena la transición epitelio-mesenquimatosa.
Como resultado, las células del epiblasto adquieren la capacidad de desplazarse hacia el interior del embrión.
Paralelamente, se establecen los ejes del embrión.
El eje craneocaudal se forma gracias a la expresión de inhibidores de WNT y BMP (CER1, DKK1, LEFTY1) en la región craneal, lo que previene la mesodermización excesiva y permite el desarrollo de las estructuras cefálicas;
El eje dorsoventral se define por los gradientes de BMP y sus antagonistas (CHORDIN, NOGGIN, FOLLISTATIN). Una alta concentración de BMP forma las estructuras ventrales, mientras que su inhibición en la región dorsal da lugar a las estructuras dorsales;
La asimetría izquierda-derecha se inicia en la región del nodo de Hensen. Aquí se expresan NODAL y LEFTY2, que activan el factor de transcripción PITX2 únicamente en el lado izquierdo del embrión. Este es un mecanismo clave que determina la correcta ubicación del corazón, el estómago y otros órganos asimétricos.
En estos procesos también participan factores de transcripción.
BRACHYURY (T) es necesario para la formación del mesodermo, especialmente del axial (notocorda);
GOOSECOID se expresa en el nodo y regula la migración celular, favoreciendo la formación de las estructuras craneales;
OTX2, LIM1 y HESX1 son factores clave para el desarrollo del prosencéfalo y la cabeza;
Los genes HOX confieren identidad segmentaria al mesodermo a lo largo del eje craneocaudal, lo que determina la ubicación de los futuros somitas y órganos internos.
Simultáneamente, continúa el desarrollo de las estructuras extraembrionarias. El sincitiotrofoblasto secreta la gonadotropina coriónica humana (hCG, codificada por los genes de la familia CGB), que mantiene la función del cuerpo lúteo y asegura la secreción de progesterona.
Para una implantación exitosa y el desarrollo de la placenta, son necesarias las metaloproteinasas (MMP2 y MMP9), que degradan la matriz intercelular del endometrio y aseguran la invasión del trofoblasto. Los factores VEGF y PGF estimulan el crecimiento de la red vascular del corion, creando las condiciones para el intercambio materno-embrionario.
Finalmente, la expresión de HLA-G asegura la tolerancia inmunológica materna, bloqueando la destrucción del trofoblasto por las células NK y previniendo el conflicto inmunológico.
Así, el desarrollo en esta etapa puede representarse como una interacción de dos sistemas:
Las señales embrionarias (NODAL, WNT, BMP, FGF y sus antagonistas) establecen la organización espacio-temporal de la gastrulación y la formación de los ejes;
Las señales extraembrionarias (CGB, MMP, VEGF, HLA-G) aseguran la nutrición, la invasión y la protección inmunológica del embrión.
FAQ
1. ¿Se puede ver al embrión en la segunda semana mediante ecografía?
A las dos semanas de desarrollo embrionario (lo que corresponde a 4 semanas de gestación), aún no es posible visualizar al embrión como tal mediante ecografía, ya que su tamaño es de solo aproximadamente un milímetro y medio. Sin embargo, un equipo moderno de ecografía transvaginal ya es capaz de detectar el saco gestacional firmemente implantado en la cavidad uterina, que aparece en la pantalla como una pequeña formación anecoica (oscura) de unos 2 a 3 milímetros de diámetro.
2. ¿Dónde se encuentra el embrión en la segunda semana de desarrollo?
Al final del día catorce del período posconcepcional, el embrión ya está completamente inmerso en el espesor del endometrio, la capa funcional de la mucosa uterina. El proceso de implantación se completa en esta etapa, y la capa externa de células (el trofoblasto) invade activamente los tejidos maternos, formando las vellosidades coriónicas primarias y las lagunas, que se llenan de sangre materna para asegurar un intercambio placentario primitivo.
3. ¿Cuál es el tamaño exacto del embrión en el día 14?
En el día 14 del desarrollo embrionario (que corresponde al estadio Carnegie 6), el disco embrionario mide tan solo entre 1,5 y 2 milímetros de longitud, y el propio embrión tiene la apariencia de una pequeña placa bilaminar plana. A pesar de sus dimensiones microscópicas, en este disco celular ya tienen lugar complejos procesos morfogenéticos, se forman la cavidad amniótica y el saco vitelino secundario, que en el futuro asegurarán el desarrollo de todos los sistemas del organismo.
4. ¿Qué síntomas experimenta la mujer en la segunda semana del desarrollo embrionario?
Durante este período, que coincide con el inicio del retraso menstrual, la mujer puede notar los primeros signos de embarazo, debidos al aumento de los niveles de la gonadotropina coriónica humana (hCG). Los síntomas característicos incluyen somnolencia, sensibilidad o tensión mamaria, molestias en la parte inferior del abdomen, así como un escaso sangrado vaginal, relacionado con el proceso de invasión del trofoblasto en la pared uterina, muy vascularizada.
Bibliografía
1.
VOKA 3D Anatomy & Pathology – Complete Anatomy and Pathology 3D Atlas (VOKA Anatomía y Patología 3D – Atlas 3D completo de anatomía y patología) [Internet]. VOKA Anatomía y Patología 3D.
Deglincerti A, Croft GF, Pietila LN, et al. Self-organization of the in vitro attached human embryo. Nature. 2016;533(7602):251-254.
6.
Shahbazi MN, Jedrusik A, Vuoristo S, et al. Self-organization of the human embryo in the absence of maternal tissues. Nat Cell Biol. 2016;18(6):700-708.
7.
Xiang L, Yin Y, Zheng Y, et al. A developmental landscape of 3D-cultured human pre-gastrulation embryos. Nature. 2020;577(7791):537-542.
8.
Tyser RCV, Mahammadov E, Nakanoh S, et al. Single-cell transcriptomic characterization of a gastrulating human embryo. Nature. 2021;600(7888):285-289.
9.
Petropoulos S, Edsgärd D, Reinius B, et al. Single-cell RNA-seq reveals lineage and X chromosome dynamics in human preimplantation embryos. Cell. 2016;165(4):1012-1026.
10.
Blakeley P, Fogarty NM, del Valle I, et al. Defining the three cell lineages of the human blastocyst by single-cell RNA-seq. Development. 2015;142(18):3151-3165.
11.
Fogarty NME, McCarthy A, Snijders KE, et al. Genome editing reveals a role for OCT4 in human embryogenesis. Nature. 2017;550(7674):67-73.
12.
Rossant J. Genetic control of early cell lineages in the mammalian embryo. Annu Rev Genet. 2018; 52:185-201.
13.
Arnold SJ, Robertson EJ. Making a commitment: cell lineage allocation and axis patterning in the early mouse embryo. Nat Rev Mol Cell Biol. 2009;10(2):91-103.
14.
Tam PPL, Behringer RR. Mouse gastrulation: the formation of a mammalian body plan. Mech Dev. 1997;68(1-2):3-25.
15.
Simunovic M, Brivanlou AH. Embryoids, organoids and gastruloids: new approaches to understanding embryogenesis. Development. 2017;144(6):976-985.
16.
Vento-Tormo R, Efremova M, Botting RA, et al. Single-cell reconstruction of the early maternal–fetal interface. Nature. 2018;563(7731):347-353.
17.
Turco MY, Moffett A. Development of the human placenta. Development. 2019;146(22):dev163428.
18.
Aplin JD, Ruane PT. Embryo–epithelium interactions during implantation. J Cell Sci. 2017;130(1):15-22.
19.
Norwitz ER, Schust DJ, Fisher SJ. Implantation and the survival of early pregnancy. N Engl J Med. 2001;345(19):1400-1408.
20.
Wang H, Dey SK. Roadmap to embryo implantation: clues from mouse models. Nat Rev Genet. 2006;7(3):185-199.
21.
Rossant J, Tam PPL. New insights into early human development: lessons from stem cell models. Nat Rev Genet. 2021;22(11):701-713.
Calle Franklin, 50, despacho 203 Boston, MA 02110 Estados Unidos
¡Gracias!
¡Tu mensaje ha sido enviado! Nuestros expertos se pondrán en contacto contigo en breve. Si tienes más preguntas, ponte en contacto con nosotros en info@voka.io.
Cookie Consent
Utilizamos cookies para mejorar su experiencia de navegación, analizar el tráfico del sitio y entregar contenido. Por favor, elija si acepta todas las cookies o desea rechazar el seguimiento no esencial.
Preferencias de Cookies
Gestione sus preferencias de cookies a continuación:
Las cookies esenciales permiten funciones básicas y son necesarias para el correcto funcionamiento del sitio web.
Nombre
Descripción
Duración
Configuración de Geolocalización
Esta cookie se utiliza para almacenar la configuración de consentimiento según la ubicación del visitante.
30 días
Preferencias de Cookies
Esta cookie se utiliza para almacenar las preferencias de consentimiento de cookies del usuario.
30 días
Google reCAPTCHA ayuda a proteger los sitios web del spam y el abuso verificando las interacciones de los usuarios mediante pruebas de seguridad.
Nombre
Descripción
Duración
_GRECAPTCHA
Google reCAPTCHA establece una cookie necesaria (_GRECAPTCHA) cuando se ejecuta con el propósito de proporcionar un análisis de riesgo.
179 días
Las cookies de estadísticas recopilan información de forma anónima. Esta información nos ayuda a entender cómo los visitantes utilizan nuestro sitio web.
Google Analytics es una herramienta poderosa que rastrea y analiza el tráfico del sitio web para ayudar a tomar decisiones de marketing fundamentadas.
Utilizado por Google Analytics para determinar qué enlaces en una página están siendo clicados
30 segundos
_ga_
ID utilizado para identificar a los usuarios
2 años
_gid
ID utilizado para identificar a los usuarios durante 24 horas después de la última actividad
24 horas
_gat
Utilizado para supervisar el número de solicitudes al servidor de Google Analytics al utilizar Google Tag Manager
1 minuto
_gac_
Contiene información relacionada con las campañas de marketing del usuario. Esta información se comparte con Google AdWords / Google Ads cuando las cuentas de Google Ads y Google Analytics están vinculadas.
90 días
__utma
ID utilizado para identificar usuarios y sesiones
2 años después de la última actividad
__utmt
Se utiliza para monitorear el número de solicitudes al servidor de Google Analytics
10 minutos
__utmb
Se utiliza para distinguir nuevas sesiones y visitas. Esta cookie se establece cuando se carga la biblioteca javascript GA.js y no existe una cookie __utmb. La cookie se actualiza cada vez que se envían datos al servidor de Google Analytics.
30 minutos después de la última actividad
__utmc
Se utiliza únicamente con versiones antiguas de Urchin de Google Analytics y no con GA.js. Se utilizaba para distinguir entre nuevas sesiones y visitas al final de una sesión.
Fin de sesión (navegador)
__utmz
Contiene información sobre la fuente de tráfico o la campaña que dirigió al usuario al sitio web. La cookie se establece cuando se carga el javascript GA.js y se actualiza cuando se envían datos al servidor de Google Analytics.
6 meses después de la última actividad
__utmv
Contiene información personalizada establecida por el desarrollador web a través del método _setCustomVar en Google Analytics. Esta cookie se actualiza cada vez que se envían nuevos datos al servidor de Google Analytics.
2 años después de la última actividad
__utmx
Utilizado para determinar si un usuario está incluido en una prueba A / B o multivariante.
18 meses
_ga
ID utilizado para identificar a los usuarios
2 años
Clarity es un servicio de análisis web que realiza el seguimiento del tráfico del sitio web y genera informes sobre él del sitio web.