2e semaine du développement embryonnaire : structure, particularités morphogénétiques et importance clinico-anatomique
Golubova D.Gynécologue, spécialiste de la fertilité, MD
20 minutes de lecture·février 26, 2026
Cet article est uniquement destiné à des fins d'information
Le contenu de ce site web, y compris les textes, les graphiques et autres matériels, est fourni à titre d'information uniquement. Il ne s'agit pas d'un avis ou d'un conseil. En ce qui concerne votre état de santé ou votre traitement spécifique, veuillez consulter votre fournisseur de soins de santé.
Le quatorzième jour du développement post-fécondation chez l’être humain représente l’une des étapes les plus importantes de l’embryogenèse précoce. Cette période marque le début de la gastrulation, au cours de laquelle les trois feuillets embryonnaires – l’ectoderme, le mésoderme et l’endoderme – se forment à partir du disque embryonnaire didermique.
Il s’agit d’une étape de transition entre l’implantation et la gastrulation active. À ce stade commence l’interaction entre l’embryon et l’organisme maternel à travers les lacunes du syncytiotrophoblaste.
Simultanément, les principaux axes corporels se mettent en place, jetant les bases de l’organisation du futur organisme :
craniocaudal ;
dorsoventral ;
gauche-droite.
Parallèlement à ces processus se poursuit la formation des structures extra-embryonnaires, indispensables aux échanges normaux entre l’embryon et l’organisme maternel.
Morphologie de l’embryon au 14e jour
À ce stade, le disque embryonnaire mesure environ 1,5 à 2 mm. Malgré sa petite taille, il conserve sa structure didermique mais entre déjà activement dans une phase de restructuration.
Épiblaste
La couche supérieure est constituée de l’épiblaste : de hautes cellules cylindriques présentant une polarité apicalo-basale marquée et une activité mitotique élevée. L’épiblaste est à l’origine de tous les tissus embryonnaires et forme simultanément la paroi de la cavité amniotique.
Ses cellules établissent de solides jonctions intercellulaires grâce à l’expression des E-cadhérines, mais ces liaisons s’affaiblissent progressivement au niveau de l’extrémité caudale, préparant ainsi l’épiblaste à la migration.
Hypoblast
La couche inférieure du disque embryonnaire est représentée par l’hypoblaste, composé de cellules aplaties formant une fine lame. Les cellules de l’hypoblaste ne participent pas directement à la formation des tissus embryonnaires, mais assurent le développement de l’endoderme extra-embryonnaire et la formation de la vésicule vitelline.
Elles sécrètent également des molécules de signalisation – LEFTY1, Cer1 et DKK1, qui inhibent l’expression de WNT et de NODAL dans la région crâniale. Cela permet d’éviter une mésodermalisation excessive et favorise le bon développement des structures antérieures.
Formation de la ligne primitive
À l’extrémité caudale du disque se forme la ligne primitive : un épaississement de l’épiblaste qui constitue le premier signe morphologique du début de la gastrulation et détermine l’axe craniocaudal de l’embryon.
Les cellules de la ligne primitive perdent leur polarité apicalo-basale, réorganisent leur cytosquelette sous le contrôle des Rho-GTPases et acquièrent des capacités migratoires.
Dans la partie crâniale de la ligne primitive apparaît le nœud primitif (ou nœud de Hensen), qui agit comme un centre organisateur. Ses cellules sécrètent NODAL, FGF8 et WNT3A, activant ainsi les processus de transition épithélio-mésenchymateuse et induisant la migration active des cellules épiblastiques vers l’intérieur du disque.
Formation des feuillets embryonnaires
À partir du 14e jour, on observe une migration des cellules épiblastiques, strictement ordonnée.
La première vague de cellules refoule l’hypoblaste et forme l’endoderme définitif, feuillet embryonnaire à l’origine de l’épithélium du tube digestif et du système respiratoire.
Les vagues suivantes forment le mésoderme, intercalé entre l’épiblaste et l’endoderme, qui donnera ensuite naissance aux muscles, aux vaisseaux, aux os, aux reins et au cœur.
Les cellules qui restent à la surface forment l’ectoderme, à partir duquel se développeront le système nerveux, les organes sensoriels et l’épiderme.
C’est donc à ce stade que se produit la différenciation finale des trois feuillets embryonnaires – ectoderme, mésoderme et endoderme – qui constitue le fondement de l’organogenèse ultérieure.
Établissement des axes spatiaux
Au niveau de la région crâniale du disque se forme la plaque préchordale – un épaississement local des cellules mésodermiques qui sert de marqueur précoce de la membrane oropharyngée et de repère important pour l’extrémité crâniale de l’embryon.
Parallèlement à ces processus morphogénétiques, les axes spatiaux de l’embryon se mettent en place.
L’axe craniocaudal est déterminé par la formation de la ligne primitive et de la plaque préchordale ;
L’axe dorsoventral est établi par la différence entre l’épiblaste, situé dorsalement, et l’hypoblaste, qui occupe une position ventrale ;
L’asymétrie gauche-droite est due à l’activité du nœud de Hensen : les cils de ses cellules créent un flux de liquide orienté, tandis que l’expression locale des gènes NODAL et LEFTY2 active le facteur de transcription PITX2 exclusivement à gauche, induisant le programme d’organogenèse du côté gauche.
Ci-dessous figure un schéma détaillé de la structure :
Embryon au 14e jour de développement (schéma 3D avec numérotation des structures)Embryon au 14e jour de développement – modèle 3D
Amnios (sphère bleue) :
Dérive de l’épiblaste ;
Forme la cavité amniotique, remplie de liquide amniotique ;
Fonction : protection de l’embryon contre les dommages mécaniques et maintien d’un environnement constant.
Les cellules de l’épiblaste y migrent pour former le mésoderme et l’endoderme.
Nœud de Hensen (point rouge foncé à l’extrémité antérieure de la ligne) :
Organisateur de l’axe embryonnaire ;
Régule la migration cellulaire, la mise en place de la notochorde et la symétrie corporelle.
Migration cellulaire (flèches) :
Flèches vertes → Endoderme Les cellules remplacent l’hypoblaste et forment le feuillet interne, à l’origine des systèmes respiratoire et digestif.
Flèches bleues → Mésoderme Les cellules se situent entre l’ectoderme et l’endoderme, formant les muscles squelettiques, les os, le tissu conjonctif, les vaisseaux et les reins.
Flèches violettes → Ectoderme Les cellules restant dans l’épiblaste constituent le feuillet externe, à partir duquel se développent la peau et le système nerveux.
Axes (annotations autour du schéma) :
Craniocaudal (tête ↔ queue) ;
Gauche-droite (future symétrie corporelle) ;
Dorsoventral (dos ↔ ventre).
Structures extra-embryonnaires
À ce stade, le développement de l’embryon est étroitement lié à la formation des structures extra-embryonnaires qui assurent sa nutrition, sa protection et la formation du futur placenta.
Amnios
L’amnios se forme à partir des amnioblastes, dérivés de l’épiblaste. Ces cellules constituent une mince membrane tapissant la cavité amniotique, située au-dessus de l’épiblaste. La cavité amniotique s’agrandit progressivement et se remplit de liquide amniotique. Dès ce stade, l’amnios commence à jouer son rôle protecteur en créant un environnement optimal pour le développement embryonnaire.
Vésicule ombilicale
Au 14e jour, la vésicule vitelline prend l’aspect d’une vésicule secondaire (définitive). Sa paroi est tapissée par les cellules de l’hypoblaste et de l’endoderme extra-embryonnaire. C’est ensuite dans la vésicule vitelline que se mettent en place les foyers d’hématopoïèse primitive et que se forment les ébauches des cellules germinales.
Bien que chez l’humain la vésicule vitelline ne participe pas à la nutrition de l’embryon, elle est importante comme source de lignées cellulaires et comme organe hématopoïétique temporaire.
Chorion
Le chorion se forme à partir des cellules du trophoblaste et du mésoderme extra-embryonnaire adjacent. À ce stade, le chorion subit des modifications clés qui déterminent la formation future du placenta. L’implantation du trophoblaste dans l’endomètre s’accompagne du développement du réseau villositaire : les villosités primaires se forment, constituées d’un axe central de cytotrophoblaste recouvert par une couche de syncytiotrophoblaste.
Au sein du syncytiotrophoblaste apparaissent des lacunes qui se remplissent progressivement de sang maternel. Ce processus marque le début de la mise en place des échanges materno-embryonnaires primitifs, première forme de circulation placentaire.
Allantoïde (ébauche initiale)
Bien que l’allantoïde commence à se former un peu plus tard (vers le 16e jour), la région à partir de laquelle elle dérivera se met en place dès ce stade dans la partie caudale du disque embryonnaire. L’allantoïde joue un rôle important dans la formation des vaisseaux sanguins placentaires et la mise en place de la vessie.
Stades de l’embryogenèse (stades Carnegie)
En embryologie, le développement humain est généralement décrit selon les stades de Carnegie (Carnegie stages), un système de classification universel fondé non pas sur l’âge de l’embryon en jours, mais sur ses caractéristiques morphologiques. Il existe au total 23 stades, qui couvrent la période allant de la fécondation jusqu’à la fin de la 8e semaine (56e jour).
À ce stade, l’embryon correspond au stade 6 de Carnegie. Cliniquement, il s’agit de la période où l’embryon ne présente pas encore d’axes corporels clairement définis (tête-queue, dos-abdomen), mais où se mettent déjà en place les principales structures extra-embryonnaires indispensables à sa croissance et à son implantation.
L’événement clé de ce stade est la mise en place des conditions nécessaires à la gastrulation, qui débutera au stade suivant. Le stade 6 de Carnegie se caractérise par les particularités suivantes :
Âge de l’embryon : environ 13 à 15 jours après la fécondation ;
Taille de l’embryon : environ 0,1 à 0,2 mm ;
Caractéristique : stade du disque embryonnaire didermique (disque embryonnaire bilaminaire).
Les processus majeurs sont les suivants :
L’embryon se présente sous forme d’un disque plat, constitué de l’épiblaste et de l’hypoblaste ;
Au-dessus de l’épiblaste se forme la cavité amniotique, tapissée par les amnioblastes ;
Sous l’hypoblaste se développe la vésicule vitelline primaire (et puis secondaire). Entre le cytotrophoblaste et la membrane exocœlomique apparaît le mésoderme extra-embryonnaire, au sein duquel se forme bientôt la cavité cœlomique extra-embryonnaire ;
Le chorion, avec ses villosités primaires (cytotrophoblaste et syncytiotrophoblaste), commence à se mettre en place.
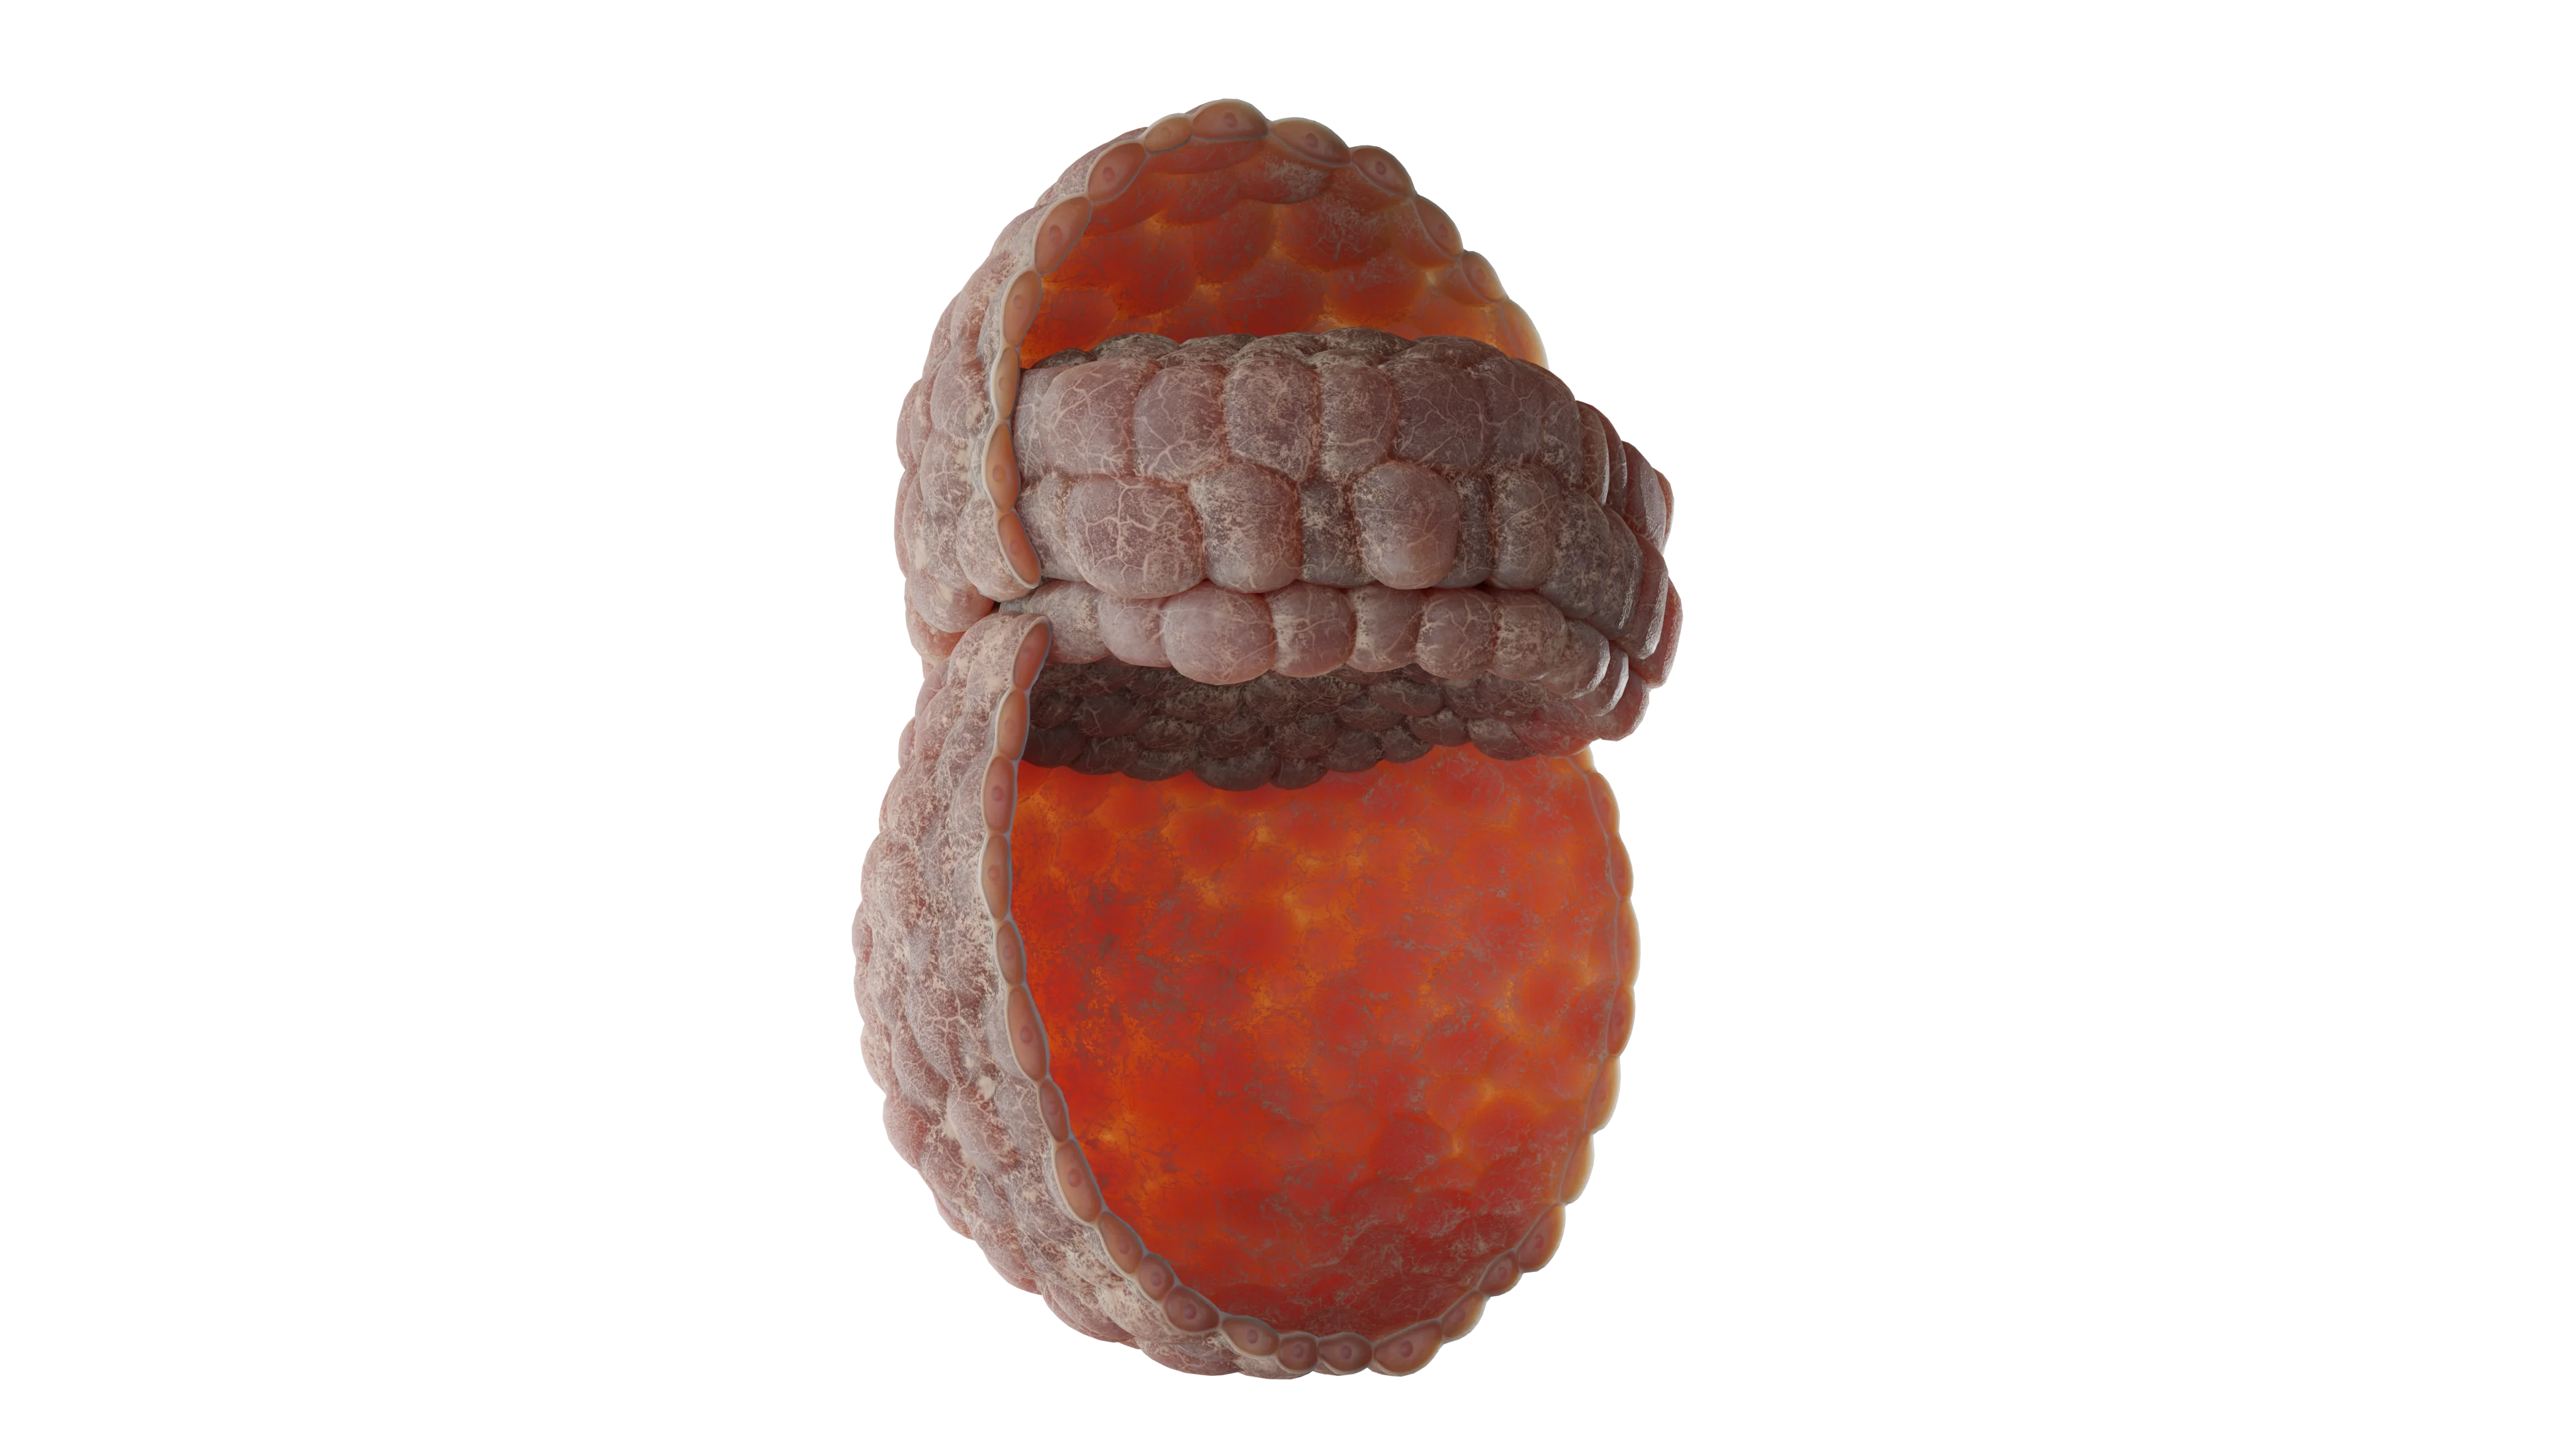
Disque embryonnaire avec cavité amniotique et vésicule vitelline – modèle 3D
Progression de l’embryogenèse (stades 5 à 7 de Carnegie)
Stade 5 (jour 11–13)
Stade 6 (jour 13–15)
Stade 7 (jour 16–19)
Achèvement de l’implantation
Vésicule vitelline secondaire
Ligne primitive et nœud de Hensen
Disque didermique
Amnios
Début de la gastrulation
cavité amniotique
Chorion avec villosités primaires
Processus notochordal
Vésicule vitelline primaire
Cavité cœlomique extra-embryonnaire
Formation des 3 feuillets
Lacunes dans le syncytiotrophoblaste
Préparation à la gastrulation
Détermination des axes corporels
Retrouvez d’autres contenus scientifiquement exacts sur nos médias sociaux
Abonnez-vous et ne manquez pas les dernières ressources
Régulation moléculaire de la gastrulation et des axes corporels
La formation de la ligne primitive et la différenciation de l’embryon en trois feuillets sont contrôlées par des cascades de signalisation complexes.
Rôle central de NODAL (famille TGF-β)
Le facteur NODAL constitue le régulateur clé, indispensable pour :
l’initiation de la migration des cellules de l’épiblaste ;
l’induction de l’endoderme ;
l’induction du mésoderme.
Son effet dépend du niveau d’expression :
expression élevée → formation de l’endoderme ;
expression plus faible → formation du mésoderme.
L’activité spatiale de NODAL est strictement contrôlée par ses antagonistes – LEFTY1, LEFTY2 et CER1, ce qui empêche une formation excessive de mésoderme.
Voie de signalisation WNT et son interaction avec BMP4
Les protéines WNT3 et WNT3A :
activent l’expression de NODAL ;
amplifient les processus de formation du mésoderme.
L’interaction de WNT avec BMP4 :
stimule la formation de la ligne primitive ;
favorise le développement du mésoderme latéral.
Cependant, un équilibre strict est requis :
BMP4 stimule le mésoderme ;
ses inhibiteurs (CHORDIN, NOGGIN, FOLLISTATIN) limitent son activité dans la région dorsale ;
l’ensemble permet la formation du mésoderme axial et de la future notochorde.
Régulation de la migration cellulaire : rôle de FGF8
La protéine FGF8, sécrétée par les cellules de la ligne primitive :
régule la migration des cellules de l’épiblaste ;
inhibe l’expression de la E-cadhérine ;
diminue l’adhérence intercellulaire ;
déclenche la transition épithélio-mésenchymateuse.
Par conséquent, les cellules de l’épiblaste acquièrent la capacité de migrer vers l’intérieur de l’embryon.
Parallèlement, les axes embryonnaires se mettent en place.
L’axe craniocaudal s’établit grâce à l’expression des inhibiteurs de WNT et de BMP (CER1, DKK1, LEFTY1) dans la région crâniale, ce qui empêche une mésodermisation excessive et permet le développement des structures céphaliques ;
L’axe dorsoventral est déterminé par les gradients de BMP et de ses antagonistes (CHORDIN, NOGGIN, FOLLISTATIN). Une concentration élevée de BMP induit la formation des structures ventrales, tandis que son inhibition dans la région dorsale façonne les structures dorsales ;
L’asymétrie gauche-droite est initiée dans la région du nœud de Hensen. À ce niveau sont exprimées les protéines NODAL et LEFTY2, qui activent le facteur de transcription PITX2 uniquement du côté gauche de l’embryon. Il s’agit du mécanisme clé déterminant le positionnement correct du cœur, de l’estomac et des autres organes asymétriques.
Des facteurs de transcription interviennent également dans ces processus :
BRACHYURY (T) est indispensable à la formation du mésoderme, notamment du mésoderme axial (notochorde) ;
GOOSECOID est exprimé au niveau du nœud et régule la migration cellulaire, soutenant ainsi la formation des structures crâniales ;
OTX2, LIM1 et HESX1 sont des facteurs clés du développement du cerveau antérieur et de la tête ;
Les gènes HOX confèrent au mésoderme une identité segmentaire le long de l’axe craniocaudal, déterminant ainsi le positionnement des futurs somites et organes internes.
Parallèlement, le développement des structures extra-embryonnaires se poursuit. Le syncytiotrophoblaste sécrète la gonadotrophine chorionique humaine (hCG, codée par les gènes de la famille CGB), qui maintient la fonction du corps jaune et assure la sécrétion de progestérone.
Une implantation réussie et le développement placentaire nécessitent l’action des métalloprotéinases (MMP2 et MMP9), qui dégradent la matrice extracellulaire de l’endomètre et permettent l’invasion trophoblastique. Les facteurs VEGF et PGF stimulent la croissance du réseau vasculaire du chorion pour créer les conditions nécessaires aux échanges materno-embryonnaires.
Enfin, l’expression de HLA-G assure la tolérance immunologique maternelle en bloquant la destruction du trophoblaste par les cellules NK et en prévenant tout conflit immunitaire.
Ainsi, le développement à ce stade peut être représenté comme l’interaction de deux systèmes :
Les signaux embryonnaires (NODAL, WNT, BMP, FGF et leurs antagonistes) déterminent l’organisation spatio-temporelle de la gastrulation et la formation des axes ;
Les signaux extra-embryonnaires (CGB, MMP, VEGF, HLA-G) assurent la nutrition, l’invasion et la protection immunitaire de l’embryon.
FAQ
1. Est-il possible de visualiser l’embryon à l’échographie à deux semaines de développement ?
À deux semaines de développement embryonnaire (ce qui correspond à 4 semaines d’aménorrhée), la visualisation directe de l’embryon par échographie n’est pas encore possible, car il ne mesure qu’environ 1,5 millimètre. Cependant, les appareils d’échographie endovaginale modernes permettent déjà de détecter le sac gestationnel, fermement implanté dans la cavité utérine, qui apparaît à l’écran sous forme d’une petite formation anéchogène (sombre) d’environ 2 à 3 millimètres de diamètre.
2. Où se trouve l’embryon à deux semaines de développement ?
À la fin du quatorzième jour de la période post-conceptionnelle, l’embryon est déjà entièrement implanté dans l’endomètre, la couche fonctionnelle de la muqueuse utérine. Le processus d’implantation s’achève à ce stade, tandis que la couche cellulaire externe (le trophoblaste) envahit activement les tissus maternels, formant les villosités choriales primaires ainsi que des lacunes qui se remplissent de sang maternel pour assurer les échanges placentaires précoces.
3. Quelle est la taille exacte de l’embryon au 14e jour ?
Au 14e jour de l’embryogenèse (correspondant au stade 6 de Carnegie), le disque embryonnaire ne mesure que 1,5 à 2 millimètres de long, et l’embryon lui-même se présente sous forme d’une minuscule plaque didermique. Malgré ses dimensions microscopiques, des processus morphogénétiques complexes se déroulent déjà au sein de ce disque cellulaire : se forment la cavité amniotique et la vésicule vitelline secondaire, posant ainsi les bases du développement futur de tous les systèmes de l’organisme.
4. Quels sont les symptômes ressentis par la femme à la deuxième semaine d’embryogenèse ?
Durant cette période, qui coïncide avec le début du retard des règles, la femme peut percevoir les premiers signes de grossesse, dus à l’augmentation du taux de gonadotrophine chorionique humaine (hCG). Les symptômes caractéristiques incluent une somnolence accrue, une sensibilité ou un gonflement des seins, une sensation de pesanteur dans le bas-ventre, ainsi que de légers saignements liés à l’implantation du trophoblaste dans la paroi utérine hypervascularisée.
Références
1.
VOKA 3D Anatomy & Pathology – Atlas 3D complet d’anatomie et de pathologie [Internet]. VOKA 3D Anatomy & Pathology (VOKA 3D Anatomie et Pathologie).
Disponible depuis : https://catalog.voka.io/
2.
Sadler TW. Langman’s Medical Embryology [Embryologie médicale de Langman]. 14th ed. Philadelphia: Wolters Kluwer; 2019.
3.
Moore KL, Persaud TVN, Torchia MG. The Developing Human: Clinically Oriented Embryology [L’être humain en développement : embryologie clinique]. 11th ed. Philadelphia: Elsevier; 2020.
4.
Schoenwolf GC, Bleyl SB, Brauer PR, Francis-West PH. Larsen’s Human Embryology [Embryologie humaine de Larsen]. 6th ed. Philadelphia: Elsevier; 2021.
5.
Deglincerti A, Croft GF, Pietila LN, et al. Self-organization of the in vitro attached human embryo [Auto-organisation de l’embryon humain implanté in vitro]. Nature. 2016;533(7602):251-254.
6.
Shahbazi MN, Jedrusik A, Vuoristo S, et al. Self-organization of the human embryo in the absence of maternal tissues [Auto-organisation de l’embryon humain en l’absence de tissus maternels]. Nat Cell Biol. 2016;18(6):700-708.
7.
Xiang L, Yin Y, Zheng Y, et al. A developmental landscape of 3D-cultured human pre-gastrulation embryos [Panorama du développement des embryons humains en culture 3D au stade de pré-gastrulation]. Nature. 2020;577(7791):537-542.
8.
Tyser RCV, Mahammadov E, Nakanoh S, et al. Single-cell transcriptomic characterization of a gastrulating human embryo [Caractérisation transcriptomique d’un embryon humain en cours de gastrulation à l’échelle de la cellule unique]. Nature. 2021;600(7888):285-289.
9.
Petropoulos S, Edsgärd D, Reinius B, et al. Single-cell RNA-seq reveals lineage and X chromosome dynamics in human preimplantation embryos [Le séquençage de l’ARN à l’échelle de la cellule unique révèle la dynamique des lignées et du chromosome X dans les embryons humains préimplantatoires]. Cell. 2016;165(4):1012-1026.
10.
Blakeley P, Fogarty NM, del Valle I, et al. Defining the three cell lineages of the human blastocyst by single-cell RNA-seq [Définition des trois lignées cellulaires du blastocyste humain par séquençage de l’ARN à l’échelle de la cellule unique]. Development. 2015;142(18):3151-3165.
11.
Fogarty NME, McCarthy A, Snijders KE, et al. Genome editing reveals a role for OCT4 in human embryogenesis [L’édition du génome révèle le rôle d’OCT4 dans l’embryogenèse humaine]. Nature. 2017;550(7674):67-73.
12.
Rossant J. Genetic control of early cell lineages in the mammalian embryo [Contrôle génétique des premières lignées cellulaires chez l’embryon de mammifère]. Annu Rev Genet. 2018;52:185-201.
13.
Arnold SJ, Robertson EJ. Making a commitment: cell lineage allocation and axis patterning in the early mouse embryo [L’engagement cellulaire : allocation des lignées cellulaires et organisation des axes chez l’embryon précoce de souris]. Nat Rev Mol Cell Biol. 2009;10(2):91-103.
14.
Tam PPL, Behringer RR. Mouse gastrulation: the formation of a mammalian body plan [Gastrulation chez la souris : formation du plan d’organisation d’un mammifère]. Mech Dev. 1997;68(1-2):3-25.
15.
Simunovic M, Brivanlou AH. Embryoids, organoids and gastruloids: new approaches to understanding embryogenesis [Embryoïdes, organoïdes et gastruloïdes : nouvelles approches pour comprendre l’embryogenèse]. Development. 2017;144(6):976-985.
16.
Vento-Tormo R, Efremova M, Botting RA, et al. Single-cell reconstruction of the early maternal–fetal interface [Reconstruction de l’interface materno-fœtale précoce à l’échelle de la cellule unique]. Nature. 2018;563(7731):347-353.
17.
Turco MY, Moffett A. Development of the human placenta [Développement du placenta humain]. Development. 2019;146(22):dev163428.
18.
Aplin JD, Ruane PT. Embryo–epithelium interactions during implantation [Interactions entre l’embryon et l’épithélium lors de l’implantation]. J Cell Sci. 2017;130(1):15-22.
19.
Norwitz ER, Schust DJ, Fisher SJ. Implantation and the survival of early pregnancy [Implantation et maintien de la grossesse précoce]. N Engl J Med. 2001;345(19):1400-1408.
20.
Wang H, Dey SK. Roadmap to embryo implantation: clues from mouse models [Déroulement de l’implantation embryonnaire : les enseignements des modèles murins]. Nat Rev Genet. 2006;7(3):185-199.
21.
Rossant J, Tam PPL. New insights into early human development: lessons from stem cell models [Nouvelles perspectives sur le développement humain précoce : enseignements des modèles basés sur les cellules souches]. Nat Rev Genet. 2021;22(11):701-713.
50, rue Franklin, bureau 203 Boston, MA 02110 États-Unis
Merci de votre attention !
Votre message est envoyé ! Nos experts vous contacteront dans les plus brefs délais. Si vous avez d'autres questions, n'hésitez pas à nous contacter à l'adresse suivante : info@voka.io
Cookie Consent
Nous utilisons des cookies pour améliorer votre expérience de navigation, analyser le trafic sur le site et fournir du contenu. Veuillez choisir si vous acceptez tous les cookies ou si vous souhaitez refuser le suivi non nécessaire.
Préférences des cookies
Gérez vos préférences en matière de cookies ci-dessous :
Les cookies essentiels permettent des fonctionnalités de base et sont nécessaires au bon fonctionnement du site.
Nom
Description
Durée
Paramètres de localisation
Ce cookie est utilisé pour stocker les paramètres de consentement en fonction de la localisation du visiteur.
30 jours
Préférences en matière de cookies
Ce cookie est utilisé pour stocker les préférences de consentement de l'utilisateur concernant les cookies.
30 jours
Google reCAPTCHA aide à protéger les sites contre le spam et les abus en vérifiant les interactions des utilisateurs à l’aide de tests de sécurité.
Nom
Description
Durée
_GRECAPTCHA
Google reCAPTCHA dépose un cookie nécessaire (_GRECAPTCHA) lors de son exécution afin de fournir une analyse des risques.
179 jours
Les cookies statistiques collectent des informations de manière anonyme. Ces informations nous aident à comprendre comment les visiteurs utilisent notre site.
Google Analytics est un outil puissant qui suit et analyse le trafic du site pour prendre des décisions marketing éclairées.
Utilisé par Google Analytics pour identifier les liens cliqués sur la page
30 secondes
_ga_
Identifiant utilisé pour identifier les utilisateurs
2 ans
_gid
Identifiant utilisé pour identifier les utilisateurs pendant 24 heures après la dernière activité
24 heures
_gat
Utilisé pour surveiller le nombre de requêtes au serveur d'analytique Google lors de l'utilisation de Google Tag Manager.
1 minute
_gac_
Contient des informations relatives aux campagnes marketing de l'utilisateur. Partagé avec Google Ads / Google Ads lorsque les comptes Google Ads et Google Analytics sont liés.
90 jours
__utma
Identifiant utilisé pour identifier les utilisateurs et les sessions.
2 ans après la dernière activité
__utmt
Utilisé pour surveiller le nombre de requêtes au serveur d'analytique Google.
10 minutes
__utmb
Utilisé pour distinguer les sessions et les nouvelles visites. Ce cookie est défini lors du chargement de la bibliothèque GA.js JavaScript et aucun cookie __utmb n'est présent. Le cookie est mis à jour chaque fois que des données sont envoyées au serveur de Google Analytics.
30 minutes après la dernière activité
__utmc
Utilisé uniquement avec les anciennes versions Urchin de Google Analytics et non avec GA.js. Il était utilisé pour distinguer les sessions et les nouvelles visites à la fin de la session.
Fin de session (navigateur)
__utmz
Contient des informations sur la source de trafic ou la campagne qui a dirigé l'utilisateur vers le site. Le cookie est défini lors du chargement de GA.js JavaScript et est mis à jour lors de l'envoi de données au serveur de Google Analytics.
6 mois après la dernière activité
__utmv
Contient des informations personnalisées définies par le développeur web via la méthode _setCustomVar dans Google Analytics. Ces cookies sont mis à jour chaque fois que de nouvelles données sont envoyées au serveur de Google Analytics.
2 ans après la dernière activité
__utmx
Utilisé pour déterminer si l'utilisateur est inclus dans un test A/B ou un test multivarié.
18 mois
_ga
Identifiant utilisé pour identifier les utilisateurs
2 ans
Clarity est un service d'analyse web qui suit le trafic du site et génère des rapports à ce sujet.